Twee populaties, één terugkoppeling
Stel dat er in een grasland veel muizen leven. Voor een torenvalk betekent dat een rijk jachtgebied. Hij vindt sneller voedsel, blijft mogelijk langer in het gebied en kan meer jongen grootbrengen. Een jaar met veel muizen kan daardoor worden gevolgd door een jaar met meer torenvalken.
Die toename van predatoren werkt vervolgens terug op de prooipopulatie. Meer torenvalken vangen samen meer muizen. Wanneer de muizenstand daalt, wordt voedsel voor de torenvalken weer schaarser. Minder jongen overleven, dieren trekken weg of sterven, en de predatiedruk neemt af. De muizen krijgen dan opnieuw ruimte om toe te nemen.
Dit is een negatieve terugkoppeling: groei roept een proces op dat die groei later afremt. Tegelijk profiteert de predator aanvankelijk juist van een grote prooipopulatie. De twee soorten zijn daardoor gekoppeld, maar reageren niet op hetzelfde moment en ook niet met dezelfde snelheid.
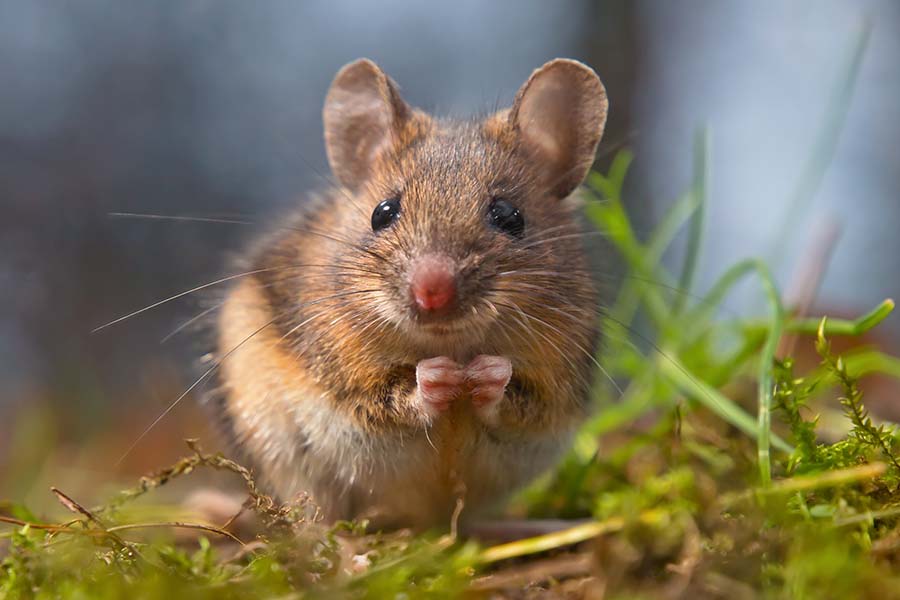 De bosmuis is prooi voor verschillende predatoren. Veranderingen in haar populatie kunnen daardoor doorwerken naar de predatorpopulatie en vervolgens weer terug naar de prooi
Waarom de predator meestal achterloopt
Een hoge prooidichtheid kan direct effect hebben op het gedrag van een predator. Een dier hoeft minder lang te zoeken en kan in dezelfde tijd meer prooien vangen. Maar een populatie van predatoren wordt niet onmiddellijk groter. Voortplanting, groei van jongen, vestiging en immigratie kosten tijd.
Veel prooisoorten planten zich bovendien sneller voort dan hun predatoren. Muizen kunnen onder gunstige omstandigheden in korte tijd meerdere nesten produceren, terwijl een roofvogel veel langer nodig heeft om een nieuwe generatie groot te brengen. Daardoor bereikt de prooipopulatie vaak eerst haar top en volgt de predator later.
Functionele respons
De vangst per predator verandert met de hoeveelheid beschikbare prooi. Bij meer prooien wordt zoeken eenvoudiger, totdat tijd voor vangen, verwerken en verteren een grens stelt.
Numerieke respons
Het aantal predatoren verandert door voortplanting, overleving, immigratie en emigratie. Veel voedsel kan dus later tot meer predatoren leiden.
Tijdsvertraging
De numerieke reactie volgt niet onmiddellijk. Juist het verschil in tempo tussen prooi en predator kan schommelingen versterken.
Vier fasen van een eenvoudige cyclus
In het eenvoudigste beeld doorloopt een gekoppeld predator-prooisysteem steeds vier fasen. Het gaat niet om vier strak gescheiden momenten, maar om een doorgaande beweging waarin oorzaak en gevolg elkaar met vertraging opvolgen.
01
De prooi neemt toe
Voedsel, ruimte en omstandigheden zijn gunstig. De prooipopulatie groeit sneller dan de predatoren kunnen reageren.
02
De predator volgt
Vangen wordt eenvoudiger. Predatoren overleven beter, planten zich succesvoller voort of trekken naar het gebied.
03
De prooi neemt af
De gezamenlijke predatiedruk wordt groter. Tegelijk kunnen voedseltekort, ziekte en concurrentie de afname versterken.
04
De predator neemt af
Door de schaarser geworden prooi daalt het voortplantingssucces en verdwijnen predatoren. Daarna kan de prooi zich opnieuw herstellen.
De predator reageert met enige vertraging op veranderingen in de prooipopulatie.
Een fitis met gevangen insecten in de snavel. Ook kleine zangvogels zijn predatoren: tijdens het zoeken naar voedsel vangen en doden zij voortdurend kleine ongewervelden.
Het eenvoudigste model
In de jaren twintig beschreven Alfred Lotka en Vito Volterra, onafhankelijk van elkaar, een eenvoudig wiskundig model voor deze wederzijdse beweging. Het model werd later bekend als het Lotka-Volterra-model. Het bevat twee gekoppelde vergelijkingen: één voor de prooi en één voor de predator.
Model
Het Lotka-Volterra-model
Prooi:
dN
dt
=
rN
−
aNP
Predator:
dP
dt
=
baNP
−
mP
N
is het aantal prooien en
P
het aantal predatoren. Zonder predatoren groeit de prooipopulatie met snelheid
r
. Ontmoetingen tussen prooi en predator worden weergegeven door
aNP
. Een deel van de geconsumeerde prooi wordt via
b
omgezet in nieuwe predatoren; zonder prooi neemt de predatorpopulatie af met snelheid
m
.
Het bijzondere van het model is niet dat het de natuur exact nabootst, maar dat het met heel weinig aannames een herkenbaar patroon laat ontstaan. De prooi neemt eerst toe, de predator volgt, de prooi daalt en daarna daalt ook de predator. In een grafiek liggen de toppen van de predator dus achter die van de prooi.
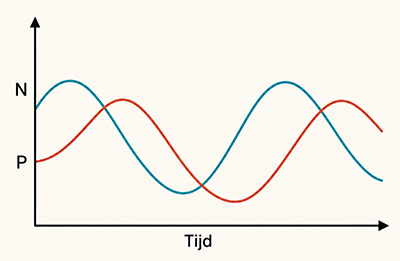
De eenvoud is tegelijk de zwakte. De prooi heeft in het model onbeperkt voedsel, de predator eet maar één prooisoort, alle individuen zijn gelijk, het landschap heeft geen schuilplaatsen en seizoenen of toeval bestaan niet. De voorspelde cycli blijven daarom keurig doorgaan en veranderen alleen wanneer de beginwaarden veranderen. Echte populaties kennen zulke ideale omstandigheden niet.
Schommeling is niet hetzelfde als evenwicht
Het woord evenwicht kan de indruk wekken dat aantallen rond één vast punt tot rust komen. Bij predator en prooi kan het systeem juist voortdurend bewegen. Een gemiddeld niveau kan over langere tijd min of meer herkenbaar blijven, terwijl de afzonderlijke jaren sterk verschillen.
Sommige schommelingen doven uit en naderen een stabiele toestand. Andere blijven terugkomen, worden groter of raken onregelmatig. De uitkomst hangt af van de groeisnelheid van de prooi, de sterfte van de predator, de snelheid waarmee predatoren prooien vinden en de mate waarin voedsel, ruimte en andere factoren de prooipopulatie begrenzen.
Daarom wordt het klassieke model vaak uitgebreid. In het Rosenzweig-MacArthur-model groeit de prooi bijvoorbeeld niet onbeperkt, maar wordt zij afgeremd door draagkracht. Ook kan een predator verzadigd raken: zelfs wanneer er extreem veel prooien zijn, kan één predator maar een beperkt aantal vangen en verwerken.
Een ecosysteem in een administratieboek
Anders bekeken
De beroemde haas-lynxgrafiek
Een van de bekendste figuren uit de ecologie toont golven van sneeuwschoenhazen en Canadese lynxen. De toppen van de lynx volgen steeds na die van de haas. De oorspronkelijke lange reeks was echter geen directe telling in het bos, maar grotendeels gebaseerd op aantallen huiden die bij handelsposten werden aangeleverd.
Dat maakt de gegevens niet waardeloos, maar wel bijzonder. De administratie van de bonthandel werd een venster op de dynamiek van een boreaal voedselweb. Tegelijk kunnen vangstinspanning, prijzen en bereikbaarheid de aantallen huiden beïnvloeden. Later veldonderzoek bevestigde de cyclus, maar liet ook zien dat voedsel, predatie, stress en meerdere predatorsoorten samen het patroon vormen.
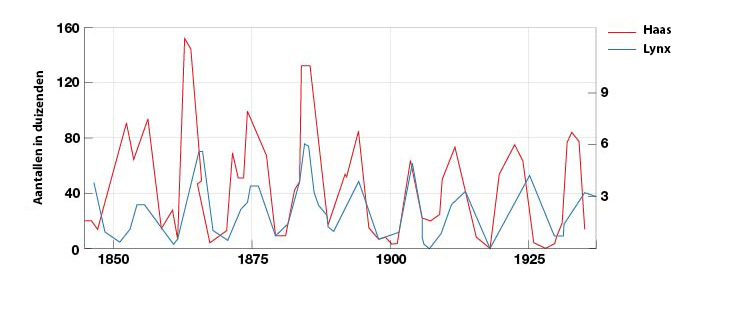 Het prooi-predatie effect van de Lynx met de Haas. Als de Lynx toeneemt, neemt de Haas op termijn af.
De sneeuwschoenhaas en zijn predatoren
Sneeuwschoenhazen in de boreale bossen van Noord-Amerika vertonen ongeveer tienjarige schommelingen. Wanneer hazen talrijk zijn, nemen ook lynxen, coyotes en andere predatoren toe. Tijdens de afname wordt predatie zeer belangrijk, maar alleen predatie verklaart niet alles.
Grote veldexperimenten waarbij onderzoekers voedsel toevoegden en predatoren gedeeltelijk buitensloten, lieten zien dat voedsel en predatie elkaar versterken. Extra voedsel alleen zorgde niet voor een eenvoudige, blijvende stijging. De combinatie van meer voedsel en minder predatiedruk had een veel sterker effect. Populatiecycli kunnen dus ontstaan uit meerdere terugkoppelingen die tegelijk werken.
Ook de erfenis van een periode met veel predatoren kan langer doorwerken dan de directe sterfte. Prooien veranderen hun gedrag en kunnen langdurige stress ervaren. De conditie en voortplanting herstellen daardoor niet noodzakelijk meteen wanneer het aantal predatoren begint te dalen.
Ruimte verandert de uitkomst
Een model zonder landschap veronderstelt dat ieder individu iedere andere plek even gemakkelijk kan bereiken. In werkelijkheid bestaat een leefgebied uit veilige en onveilige delen, barrières, schuilplaatsen en afstanden. Prooien kunnen tijdelijk ontsnappen aan predatie, terwijl predatoren tijd nodig hebben om nieuwe plekken te koloniseren.
C.B. Huffaker liet dit in 1958 zien met roofmijten en prooimijten in kunstmatige landschappen. In eenvoudige opstellingen vonden de predatoren hun prooi snel en stortte het systeem in. Met meer ruimtelijke structuur, barrières en moeilijk bereikbare plekken konden prooien ontsnappen, nieuwe plekken koloniseren en langer naast hun predatoren blijven bestaan. De schommelingen werden niet veroorzaakt door twee soorten alleen, maar ook door de manier waarop ruimte hun ontmoetingen organiseerde.
Op grotere schaal gebeurt iets vergelijkbaars in natuurgebieden, akkers, meren en eilanden. Lokale prooipopulaties kunnen verdwijnen en later opnieuw worden aangevuld. Predatoren kunnen gebieden tijdelijk verlaten. Zulke ruimtelijke verschillen dempen soms een regionale cyclus, maar kunnen ook lokale pieken en dalen veroorzaken.
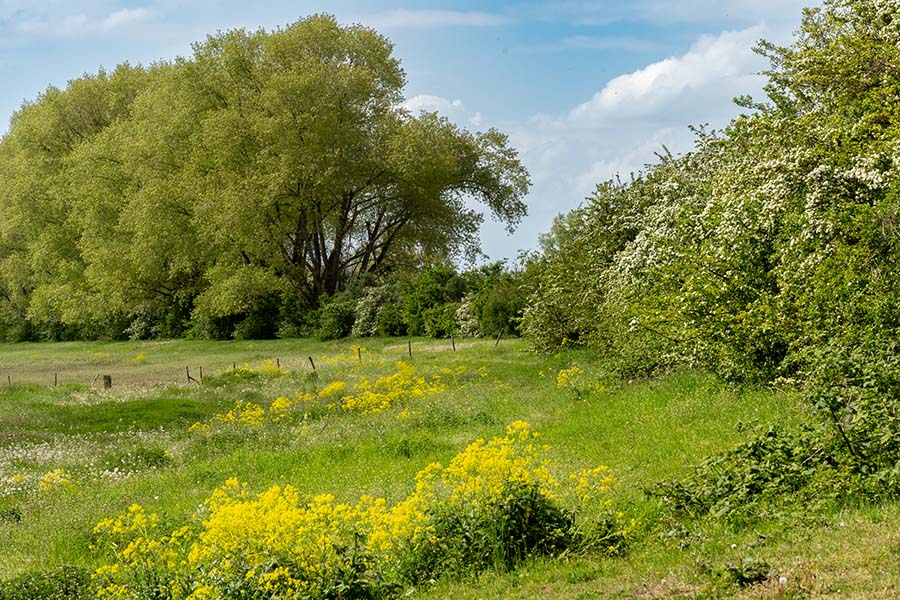 Een landschap biedt niet overal dezelfde kansen. Dichte struiken, ruigte en bosranden kunnen prooidieren beschutting geven tegen predatoren, terwijl open stukken juist meer risico opleveren. Zo beïnvloedt de structuur van het landschap waar organismen veilig kunnen foerageren, rusten of zich voortplanten.
Waarom de natuur zelden één nette golf tekent
In een echt voedselweb heeft een predator vaak meer dan één prooisoort. Wanneer de belangrijkste prooi schaars wordt, kan hij overschakelen op ander voedsel. Prooien hebben op hun beurt meerdere vijanden. Ook ziekte, winterweer, droogte, vegetatie, concurrentie en menselijke ingrepen veranderen de aantallen.
Daarnaast zijn niet alle individuen gelijk. Jonge dieren zijn soms gemakkelijker te vangen, oudere predatoren jagen efficiënter en de voortplanting vindt alleen in bepaalde seizoenen plaats. Toeval speelt vooral bij kleine populaties een grote rol. Daardoor kunnen cycli verschuiven, tijdelijk verdwijnen of per gebied anders verlopen.
Het ecologische inzicht blijft echter overeind: de aantallen van een soort kunnen niet altijd worden begrepen door alleen naar die soort te kijken. De verandering van de prooi beïnvloedt de predator, en de reactie van de predator werkt later terug op de prooi.
Van model naar watervlo
Watervlooien en hun predatoren vormen een geschikt systeem om deze beweging zichtbaar te maken. Watervlooien kunnen zich snel voortplanten en reageren sterk op de hoeveelheid algen. Vissen en andere predatoren verminderen hun aantallen, maar doen dat niet los van voedsel, temperatuur, schuilplaatsen en de samenstelling van het hele voedselweb.
In een simulatie kunnen we één relatie tijdelijk uitvergroten. Wat gebeurt er wanneer de prooi snel groeit? Hoeveel later reageert de predator? Wanneer doven schommelingen uit en wanneer worden ze groter? Zo helpt een model niet om de toekomst exact te voorspellen, maar om te onderzoeken welke terugkoppelingen een patroon kunnen voortbrengen.
In het volgende artikel wordt het systeem breder. Dan gaat het niet meer alleen om twee populaties, maar om nutriënten, algen, watervlooien, vissen en waterplanten — en om de vraag waarom een ondiepe plas helder kan blijven of juist troebel kan worden.
De kern
Samengevat
Prooi en predator in beweging
Predator en prooi vormen een gekoppeld systeem. Veel prooi kan leiden tot een betere voedselvoorziening en later tot meer predatoren. De toegenomen predatiedruk kan vervolgens de prooipopulatie verkleinen, waarna ook het aantal predatoren afneemt.
De vertraging tussen deze reacties kan schommelingen veroorzaken. Het Lotka-Volterra-model laat dat basismechanisme helder zien, maar veronderstelt een sterk vereenvoudigde wereld zonder draagkracht, alternatieve prooien, seizoenen of ruimtelijke structuur.
Echte cycli ontstaan daarom meestal uit meerdere processen tegelijk. Voedsel, predatie, gedrag, stress, landschap en verplaatsing bepalen samen of populaties stabiel worden, blijven schommelen of lokaal verdwijnen.
Vragen om mee verder te kijken
Waarom bereikt een predatorpopulatie haar hoogste aantal meestal later dan de prooipopulatie?
Wat is het verschil tussen de functionele respons van één predator en de numerieke respons van de hele predatorpopulatie?
Waarom blijven de cycli in het klassieke Lotka-Volterra-model doorgaan, terwijl echte schommelingen vaak veranderen of uitdoven?
Hoe kunnen schuilplaatsen en ruimtelijke verschillen voorkomen dat een predator al zijn prooien bereikt?
Waarom is een grafiek van lynxenhuiden geen directe telling van lynxen, en waarom kan zij toch ecologisch waardevol zijn?