Van verandering naar groei
In het vorige deel zagen we dat geboorte en immigratie individuen aan een populatie toevoegen, terwijl sterfte en emigratie individuen laten verdwijnen. Wanneer de toevoeging groter is dan het verlies, neemt de populatieomvang toe. Is het verlies groter, dan krimpt de populatie. Zijn beide ongeveer in evenwicht, dan blijft het aantal min of meer gelijk.
Ecologen noemen de verandering in het aantal individuen per tijdseenheid de groeisnelheid. Dat kan worden uitgedrukt als het aantal individuen dat er per dag, seizoen of jaar bijkomt. Maar alleen het absolute aantal is niet altijd genoeg. Een toename van honderd individuen is voor een populatie van tweehonderd enorm, terwijl dezelfde toename bij een populatie van een miljoen nauwelijks zichtbaar is. Daarom kijken ecologen ook naar groei per individu, ofwel de relatieve groeisnelheid.
Groeien met een vast aantal of met een verhouding
Stel dat een populatie ieder jaar precies tien individuen groter wordt. Dan verloopt de groei lineair: na elk jaar komt hetzelfde aantal erbij. In een grafiek levert dat een rechte lijn op. Veel biologische populaties groeien echter niet op die manier. Wanneer individuen zich voortplanten, hangt het aantal nieuwe nakomelingen meestal mede af van hoeveel voortplantende individuen er al zijn.
Een populatie van tien bladluizen kan in een gunstige periode bijvoorbeeld twintig nakomelingen voortbrengen. Een populatie van honderd bladluizen kan onder vergelijkbare omstandigheden veel meer nakomelingen produceren. De groei is dan geen vaste toevoeging, maar een verhouding van de bestaande populatie. Hoe groter de populatie wordt, hoe groter ook het aantal individuen dat aan de volgende groeistap kan bijdragen.
1
Begin
Eén individu vormt het uitgangspunt van de reeks.
2
Eerste verdubbeling
De toevoeging hangt af van wat er al aanwezig is.
4
Versnelling
Steeds meer individuen kunnen aan de volgende stap bijdragen.
8
Snelle toename
De groei wordt zichtbaar steiler, ook zonder dat de verhouding verandert.
Bij verdubbeling ontstaat de reeks 1, 2, 4, 8, 16 enzovoort. Na twintig verdubbelingen is één individu theoretisch uitgegroeid tot meer dan een miljoen. Dat laat zien waarom proportionele groei aanvankelijk onschuldig kan lijken en later plotseling zeer snel kan gaan.
Exponentiële groei: een tijdelijk ideaalbeeld
Wanneer de groei evenredig is met het aantal aanwezige individuen, spreken ecologen van exponentiële groei. De grafiek begint dan relatief vlak en buigt steeds steiler omhoog. Door die vorm wordt zij vaak een J-curve genoemd.
Exponentiële groei kan optreden wanneer een populatie klein is en de omstandigheden gunstig zijn: er is veel voedsel of licht, voldoende ruimte, weinig ziekte en nog weinig invloed van concurrenten of predatoren. Denk aan bacteriën die een verse voedingsbodem koloniseren, algen die na een toevoer van voedingsstoffen snel toenemen, of een soort die een nieuw gebied bereikt waar zij aanvankelijk weinig wordt beperkt.
De snelheid waarmee een populatie onder zulke omstandigheden kan toenemen wordt beschreven met r: de groei per individu per tijdseenheid. Wanneer r positief is, groeit de populatie. Bij r gelijk aan nul blijft zij gemiddeld gelijk. Is r negatief, dan neemt de populatie af. De hoogst haalbare waarde onder vrijwel ideale omstandigheden wordt vaak de intrinsieke groeisnelheid genoemd.
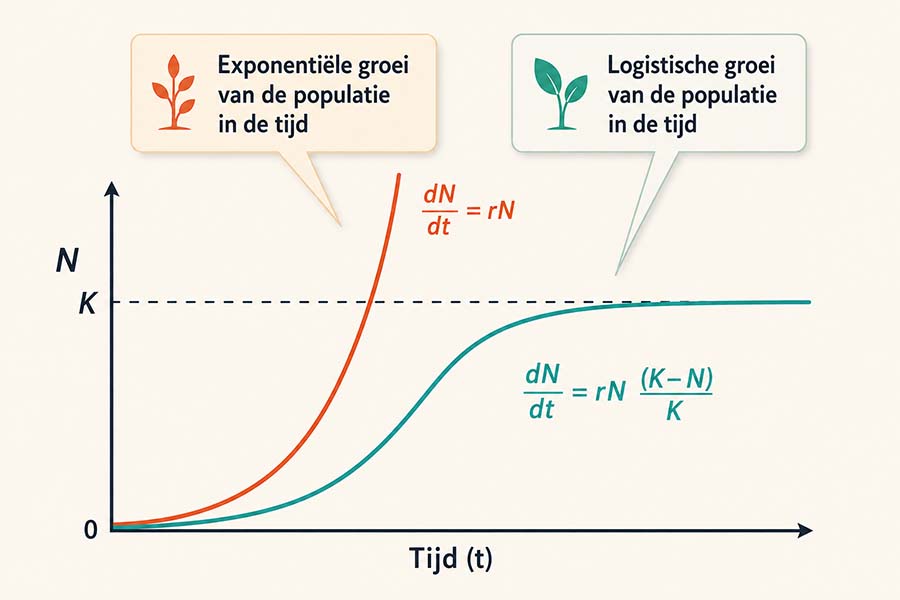 Exponentiële en Logistische groei: Een populatie kan in theorie exponentieel groeien wanneer de groei nog niet wordt afgeremd door concurrentie binnen de soort. De populatie neemt dan steeds sneller toe. Wanneer individuen bij toenemende dichtheid sterker om dezelfde hulpbronnen gaan concurreren, remt de groei af en ontstaat een S-vormig, of sigmoïdaal, groeipatroon. De twee curves laten deze patronen zien zoals ze worden beschreven door respectievelijk het exponentiële en het logistische groeimodel.
Waarom exponentiële groei niet kan blijven doorgaan
Een J-curve kan niet onbeperkt omhoog blijven lopen. Een leefgebied bevat een eindige hoeveelheid ruimte en hulpbronnen. Voedsel raakt schaarser, planten beschaduwen elkaar, afvalstoffen hopen zich op en ziekte kan zich gemakkelijker verspreiden. Ook predatie, droogte, vorst en andere invloeden kunnen de groei remmen.
Dat betekent niet dat exponentiële groei onwerkelijk is. Zij is juist een bruikbaar model voor de vroege fase van een toename, wanneer beperkingen nog weinig merkbaar zijn. Maar in de natuur verandert de situatie terwijl de populatie groeit.
Logistische groei: groei die zichzelf afremt
Om die afremming zichtbaar te maken gebruiken ecologen vaak het logistische groeimodel. Daarin groeit een kleine populatie aanvankelijk bijna exponentieel. Naarmate het aantal individuen toeneemt, worden hulpbronnen schaarser en neemt de netto groei af. De curve buigt af en nadert een niveau waarop de populatie gemiddeld niet verder groeit. De grafiek krijgt daardoor de vorm van een langgerekte S.
Dat afvlakkende niveau noemen we de draagkracht, aangeduid met K. De draagkracht is het aantal individuen dat een gebied onder de heersende omstandigheden op langere termijn kan onderhouden. Rond K komen er gemiddeld ongeveer evenveel individuen bij als er verdwijnen. De netto groei is dan ongeveer nul.
Evenwicht is geen stilstand, maar een voortdurend proces.
Dat betekent niet dat geboorte en sterfte stoppen. Ook bij een schijnbaar stabiele populatie worden individuen geboren, sterven andere en kan verplaatsing plaatsvinden. Alleen de balans tussen toevoeging en verlies verandert gemiddeld nauwelijks.
Model
Twee eenvoudige groeimodellen
Exponentiële groei:
dN
dt
=
rN
De toename is evenredig met het aantal individuen dat al aanwezig is.
Logistische groei:
dN
dt
=
rN
K − N
K
Naarmate
N
de draagkracht
K
nadert, neemt de groei af. Wanneer
N = K
, is
K − N = 0
. Daardoor wordt de groeisnelheid
dN/dt = 0
en groeit de populatie volgens het model niet verder.
01
Kleine populatie
Veel hulpbronnen per individu; groei kan snel versnellen.
02
Rond K/2
In het eenvoudige logistische model is de absolute toename vaak het grootst.
03
Dicht bij K
Beperkingen worden sterker; de groei vertraagt.
04
Rond K
Geboorte en verlies houden elkaar gemiddeld in evenwicht.
Draagkracht is geen vast getal
K wordt soms voorgesteld als een harde grens die voor een soort altijd hetzelfde is. Dat is misleidend. Draagkracht hoort niet alleen bij de soort, maar bij een soort in een bepaald gebied en onder bepaalde omstandigheden. Hetzelfde aantal konijnen kan ruim binnen de draagkracht van een voedselrijk grasland liggen en boven de draagkracht van een droge, schrale plek.
Ook binnen hetzelfde gebied kan K veranderen. Een nat voorjaar kan veel plantengroei en voedsel opleveren, terwijl een droge zomer de beschikbare hulpbronnen sterk vermindert. Beheer kan schuilplaatsen toevoegen of juist verwijderen. Een ziekte kan tijdelijk de overleving verlagen. Draagkracht beweegt daarom mee met seizoenen, klimaat, voedsel, water, ruimte en de kwaliteit van het leefgebied.
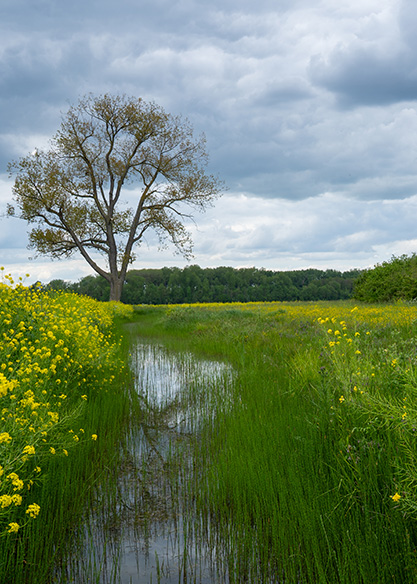 Hetzelfde leefgebied in een gunstig seizoen met betere draagkracht
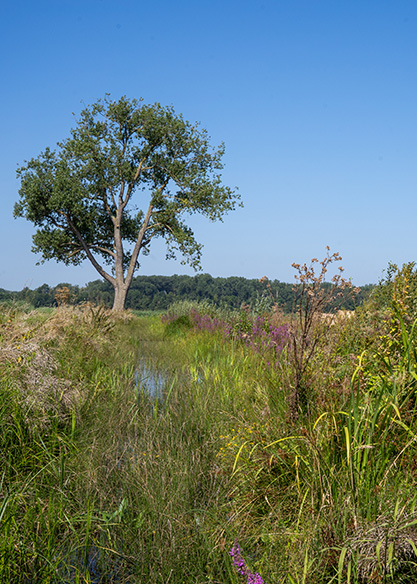 Hetzelfde leefgebied in een ongunstig seizoen met slechtere draagkracht
Overschrijden, terugvallen en schommelen
In een eenvoudig model nadert de populatie K steeds rustiger. Werkelijke populaties gedragen zich vaak grilliger. Wanneer veel jongen tegelijk worden geboren, kan het aantal tijdelijk boven de beschikbare draagkracht uitkomen. De gevolgen van schaarste worden soms pas later zichtbaar, bijvoorbeeld wanneer de winter begint of wanneer voedselvoorraden zijn uitgeput.
Zo kan een populatie eerst doorschieten en daarna terugvallen. Ook seizoenen kunnen een regelmatig patroon veroorzaken: veel insecten in de zomer en weinig in de winter, of veel kiemplanten na een nat voorjaar en hoge sterfte tijdens een droge periode. Daarnaast kunnen toevallige gebeurtenissen en veranderingen in predatie, ziekte of weer de aantallen van jaar tot jaar laten schommelen.
Daarom is K meestal geen lijn die in veldgegevens exact zichtbaar wordt. Het is een denkbeeldige maat voor wat het systeem op langere termijn kan dragen. De werkelijke populatie kan daaronder, erboven of eromheen bewegen.
Anders bekeken
K is geen muur
Een populatie stopt niet keurig zodra zij de draagkracht K bereikt. Individuen reageren op veranderende omstandigheden, en die reactie kan vertraagd zijn. Daardoor kan een populatie tijdelijk boven K uitkomen.
Na zo’n overschrijding kunnen voedselgebrek, sterfte of vertrek toenemen. De populatie zakt dan weer terug, soms geleidelijk en soms abrupt. Draagkracht kan je dus beter zien als een veranderlijk niveau waar de populatie omheen kan bewegen dan als een strak plafond.
Niet iedere soort groeit even snel
De mogelijke groeisnelheid r verschilt sterk tussen soorten. Bacteriën kunnen zich onder gunstige omstandigheden in korte tijd delen. Bladluizen en watervlooien kunnen in een seizoen vele generaties voortbrengen. Grote zoogdieren, roofvogels en langlevende bomen beginnen vaak later met voortplanting en produceren per tijdseenheid minder nakomelingen.
Die verschillen hangen samen met de levenscyclus: de leeftijd waarop voortplanting begint, het aantal nakomelingen, de tijd tussen generaties en de kans dat jonge en volwassen individuen overleven. Een hoge voortplantingssnelheid betekent bovendien niet automatisch dat een populatie altijd groeit. Wanneer veel jonge individuen sterven of het gebied verlaten, kan de netto toename klein of zelfs negatief zijn.
Dichtheid verandert de kansen van individuen
Naarmate een populatie dichter wordt, veranderen vaak de omstandigheden die individuele organismen ervaren. Er is minder voedsel, licht, water of ruimte per individu. Contacten tussen soortgenoten nemen toe en daarmee soms ook de overdracht van ziekten of parasieten. Zulke effecten worden dichtheidsafhankelijk genoemd: zij worden sterker of zwakker naarmate er meer individuen in hetzelfde gebied leven.
Dichtheidsafhankelijkheid is de belangrijkste reden waarom logistische groei zichzelf kan afremmen. De precieze mechanismen daarachter — vooral de concurrentie tussen individuen van dezelfde soort — vormen het onderwerp van het volgende deel. Hier is vooral belangrijk dat groei de omgeving van de populatie verandert en daarmee haar eigen verdere groei beïnvloedt.
Waarom groeimodellen nuttig zijn
Geen echte populatie volgt een formule volmaakt. Toch zijn groeimodellen waardevol, omdat zij verschillende vragen uit elkaar halen. Is de populatie nog in een snelle uitbreidingsfase? Nadert zij een grens? Verandert de draagkracht? Of wijkt het werkelijke patroon sterk af omdat predatie, ziekte, verplaatsing of toeval een grote rol spelen?
Die vragen zijn relevant bij natuurbeheer, soortenbescherming, visserij, plaagbestrijding en het volgen van invasieve soorten. Een model voorspelt niet automatisch precies hoeveel individuen er volgend jaar zullen zijn. Het helpt vooral om zichtbaar te maken welke processen we zouden moeten meten en welke aannames achter onze verwachtingen liggen.
De kern
Samengevat
Hoe populaties groeien
Wanneer de toevoeging van individuen groter is dan het verlies, groeit een populatie. Bij exponentiële groei is de toename evenredig met het aantal individuen dat al aanwezig is. Daardoor kan de groei steeds sneller verlopen en ontstaat een J-vormige curve.
In de natuur gaat die versnelling niet onbeperkt door. Hulpbronnen en ruimte worden schaarser, waardoor de groei afremt. Het logistische model beschrijft dit als een S-curve die de draagkracht K nadert. Die draagkracht is geen vast plafond, maar verandert met de omstandigheden en kan door werkelijke populaties tijdelijk worden overschreden.
Vragen om mee verder te kijken
Waarom kan een kleine populatie langzaam lijken te groeien en later toch zeer snel toenemen?
Onder welke omstandigheden is exponentiële groei tijdelijk een bruikbaar model?
Waarom is de draagkracht van een gebied geen vast getal?
Kan een populatie rond de draagkracht blijven terwijl geboorte en sterfte voortdurend doorgaan?
Welke vertragingen kunnen ervoor zorgen dat een populatie eerst boven de draagkracht uitkomt en daarna terugvalt?